
🎬 AnaArıcı yapay zekâ seslendirmeli video
Oksidatif stres, bir canlının serbest radikal üretimi ile bunları etkisizleştirme kapasitesi arasındaki dengenin bozulmasıdır. Bal arısı bu dengeyi tutmak zorunda olan sıra dışı bir organizmadır: uçuş kasları kendi ağırlığının katları kadar oksijen yakabilir, kraliçe aynı genomla 5-7 yıl yaşarken yaz tarlacısı 3-4 haftada ölür. Aradaki farkın önemli bir kısmı oksidatif hasarın nasıl yönetildiğinde yatar. Bu yazı, oksidatif stresi soyut bir “hücre hasarı” başlığı olarak değil, arıcının kovanında gözleyebileceği bir mekanizma olarak ele alıyor: hangi enzimler devrede, vitellogenin neden bir antioksidan gibi davranır, varroa ve pestisitler bu sistemi nasıl zorlar ve beslenme ile kışlama yönetimi bu tabloyu nasıl değiştirir.
Oksidatif stres tam olarak nedir?
Hücrenin solunum zincirinde oksijen tam olarak suya indirgenmez; bir kısmı süperoksit anyonu, hidrojen peroksit ve hidroksil radikali gibi reaktif oksijen türlerine (ROS) dönüşür. Bu moleküller kararlı değildir ve en yakın hedefe saldırır: membran lipitleri, proteinler, DNA. Arılarda oksidatif hasarın ölçümünde iki belirteç yaygın kullanılır: lipit peroksidasyonunun son ürünü malondialdehit (MDA) ve protein oksidasyonunun göstergesi protein karbonil içeriği.
ROS’un tamamı zararlı değildir. Bağışıklık hücreleri patojenleri öldürmek için ROS üretir; hücre içi sinyal iletiminde de rol alır. Sorun, üretimin temizleme kapasitesini aşmasıdır. Arıda bu eşiği zorlayan üç doğal faktör vardır: uçuş metabolizması (tarlacı arının kanat kası dakikada yüzlerce kez kasılır), yüksek vücut sıcaklığı (kuluçka bakımı sırasında 35 °C civarı) ve bağışıklık aktivasyonu (her patojen yanıtı beraberinde ROS üretir). Bu üç yük üst üste bindiğinde arı, savunma kapasitesinin sınırına yaklaşır.
Arının antioksidan savunması üç kattan oluşur
Böceklerde antioksidan sistem, memelilerdeki kadar çok kopyalı genlerle değil, daha ince ayarlı bir düzenekle çalışır. Corona ve Robinson (2006), bal arısı genomundaki antioksidan gen ailesini tanımladıklarında, bu setin memelilere göre daha sınırlı sayıda gen içerdiğini gösterdi. Bu bulgu, arının çevresel strese neden duyarlı olduğunu açıklayan moleküler zeminin bir parçasıdır. Savunma üç katta yürür:
- Birinci kat — enzimler. Süperoksit dismutaz (SOD) süperoksiti hidrojen peroksite çevirir; katalaz (CAT) bu peroksiti su ve oksijene parçalar; glutatyon S-transferaz (GST) ve glutatyon peroksidaz indirgenmiş glutatyonu kullanarak lipit peroksitlerini etkisizleştirir. Bu enzimlerin ifadesi ve aktivitesi yaşa, besine ve çevre koşullarına göre değişir.
- İkinci kat — küçük moleküller. Glutatyon, ürat, askorbat ve tokoferol doğrudan radikal süpürür. Arılarda ürat düzeyi memelilere göre yüksektir ve uzun ömürlü bireylerde koruyucu rol oynadığı düşünülür.
- Üçüncü kat — onarım. Hasar görmüş proteinler proteazomla, oksitlenmiş lipitler membran onarım yollarıyla temizlenir. Bu kat yavaş çalışır; bu nedenle birikmiş hasar arının yaşlanma hızını belirler.
Son yıllarda bu listeye selenoproteinler eklendi. Arı genomunda tanımlanan SelT ve SelK gibi selenyum içeren proteinler, redoks dengesinin ince ayarında görev alır; pestisit çalışmalarında bu genlerin ifadesi belirteç olarak ölçülmektedir (Tahir ve ark., 2023).
Vitellogenin: yumurta proteini olarak bilinen antioksidan
Vitellogenin (Vg), adı “yumurta sarısı öncüsü” olsa da bal arısında tek işlevli bir üreme proteini değildir. Yağ gövdesinde üretilir, hemolenfte dolaşır ve aynı anda birkaç işi yapar: işçi arıda hipofaringeal bezin salgı kapasitesini besler, bağışıklıkta rol alır ve serbest radikalleri bağlar. Seehuus ve arkadaşlarının (2006) PNAS’ta yayımlanan çalışması bu son işlevi doğrudan gösterdi: Vg ifadesi RNA interferans ile baskılanan işçi arılarda oksidatif hasar belirteçleri yükseldi ve ömür kısaldı. Yani Vg, arıda bir antioksidan gibi davranıyor.
Bu bulgu, arıcılıkta gözlenen iki olguyu birbirine bağlar. Birincisi mevsimsel ömür farkı: kış arısı yağ gövdesi zengin, Vg düzeyi yüksek ve 5-6 ay yaşar; yaz tarlacısı ise Vg’yi neredeyse tüketmiş durumdadır ve haftalarla ölçülen bir ömre sahiptir. İkincisi iş bölümünün geri dönüşü: Amdam ve Omholt’un (2003) “çift baskılayıcı” modeline göre Vg yüksekken juvenile hormon (JH) düşük kalır ve arı kovan içi işlerde kalır; Vg düştükçe JH yükselir ve tarlacılığa geçiş başlar. Corona ve arkadaşları (2007) aynı ekseni ana arıya kadar götürdü: ana arıda yüksek Vg, düşük JH ve düşük insülin sinyali birlikte uzun ömürle ilişkilidir.
Pratik sonucu şudur: kolonide yağ gövdesi ve Vg düzeyini koruyan her uygulama — yeterli polen, kaliteli kış kadrosu, genç ana arı — dolaylı olarak antioksidan kapasiteyi de korur. Bu ilişkiyi vitellogenin ve arılar için önemi yazısında ayrıntılı bulabilirsiniz.
Yaş, iş bölümü ve uçuşun bedeli
Tarlacı arı, kovandaki en yüksek metabolik yüke sahip bireydir. Kanat kasları uçuş sırasında vücut ağırlığının çok üzerinde oksijen tüketir; buna güneş ışığındaki UV, sıcaklık dalgalanmaları ve hava kirleticileri eklenir. Bu nedenle tarlacı arılarda protein karbonil ve MDA düzeylerinin kovan arılarından yüksek çıkması beklenir ve birçok çalışmada gösterilmiştir.
Ancak tablo tek çizgili değildir. Rueppell ve arkadaşları (2017), erken ergin dönemde kısa süreli stres uygulanan işçi arılarda ölüm oranının belirgin biçimde arttığını, buna karşın oksidatif hasar ölçütlerinde ve sosyal davranışta aynı büyüklükte bir fark bulunmadığını bildirdi. Bu, önemli bir uyarıdır: oksidatif hasar ömür farkının tek açıklaması değildir. Erken yaşam koşulları, bağışıklık yatırımı ve beslenme geçmişi de sonucu belirler. Arıcılık açısından anlamı şudur: “antioksidan” mantığıyla tek bir ürüne ya da tek bir ölçüte yaslanmak yanıltıcıdır; koloni sağlığı çok değişkenli bir denklemdir.
Varroa ve virüsler: oksidatif yükün en pratik kaynağı
Bir arıcının kovanında oksidatif stresi en hızlı artıran etken, laboratuvar değil Varroa destructor‘dır. Akar, yağ gövdesi dokusunu delerek beslenir; bu hem doğrudan doku hasarı hem de sürekli bir bağışıklık uyarımı demektir. Bağışıklık yanıtı ROS üretimini artırır, yani arının antioksidan kapasitesi bir yandan da savunma için harcanır. Deforme kanat virüsü (DWV) gibi akar kaynaklı virüsler tabloyu ağırlaştırır.
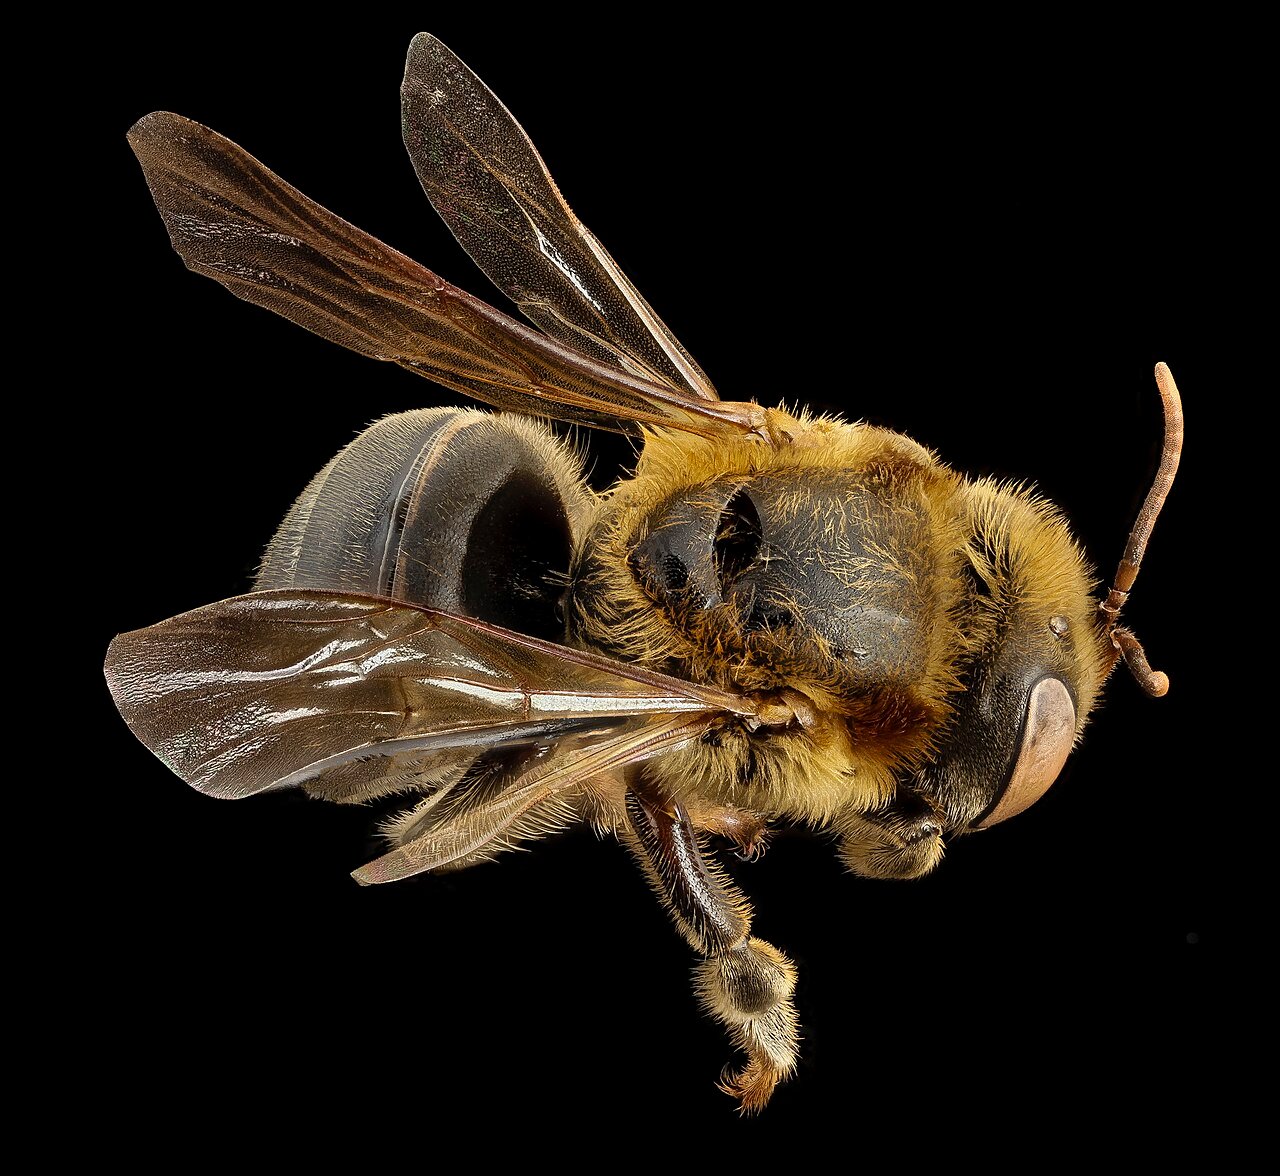
Bu yüzden varroa mücadelesi bir “parazit sorunu” olarak değil, aynı zamanda bir oksidatif yük yönetimi olarak okunmalıdır. Kış kadrosunu varroa baskısı altında üretmek, arıyı hem virüs hem de oksidatif hasarla kışa sokmak demektir. Zamanlama ve etken seçimi için varroa mücadelesi takvimi ve 2026 güncel yöntemleri yazılarına bakabilirsiniz.
Pestisitler: laboratuvar kanıtı ne gösteriyor?
Pestisitlerin oksidatif stres üzerindeki etkisi, doz ve bileşiğe göre çarpıcı biçimde değişir. Tahir ve arkadaşları (2023), yeni doğmuş kardeş arılara 11 gün boyunca subletal dozda altı bileşik verdi: tunicamisin, tapsigargin, metformin, parakuat, hidrojen peroksit ve imidakloprid. Sonuçlar iki açıdan öğreticiydi:
- Protein hasarı her bileşikte oluşmadı. 9. günde protein karbonil düzeyi yalnızca parakuat (1000 ppb) ve imidakloprid (20 ppb) verilen arılarda anlamlı biçimde yüksekti. Diğer dört bileşikte kontrolle fark yoktu.
- Ölüm oranı ile hasar aynı şeyi ölçmüyor. Parakuat ve hidrojen peroksit ölümü en çok artıran bileşikler oldu; imidakloprid ise bu deneyde hayatta kalmayı kontrolün altına düşürmedi, buna rağmen protein hasarı üretti. Yani “arı ölmediyse zarar yok” çıkarımı yanlıştır.
Sahada bu, özellikle ekim ilaçlamaları ve tohum ilacı tozları döneminde önemlidir: ölü arı sayısı düşük olsa bile kolonide sessiz bir oksidatif yük birikiyor olabilir. Nikotinoid maruziyetinin koloni düzeyindeki etkileri pestisit ve nikotinoid maruziyeti yazısında derlendi.
Beslenme: polen fenolikleri ve balın antioksidan kapasitesi
Arının antioksidan savunmasının hammaddesi büyük ölçüde polenden gelir. Polen; protein, lipit, vitamin ve fenolik bileşikler taşır. Ulusoy ve Kolaylı (2013), Anzer poleninin fenolik bileşimini ve antioksidan özelliklerini incelediğinde polenin belirgin bir radikal süpürme kapasitesi gösterdiğini bildirdi; bu kapasite bitki kaynağına göre büyük farklılık gösterir. Tek kaynaklı bir polen akımı, mono-floral bir bahçe ya da sürekli aynı tarlaya bağımlılık, antioksidan çeşitliliğini de daraltır.
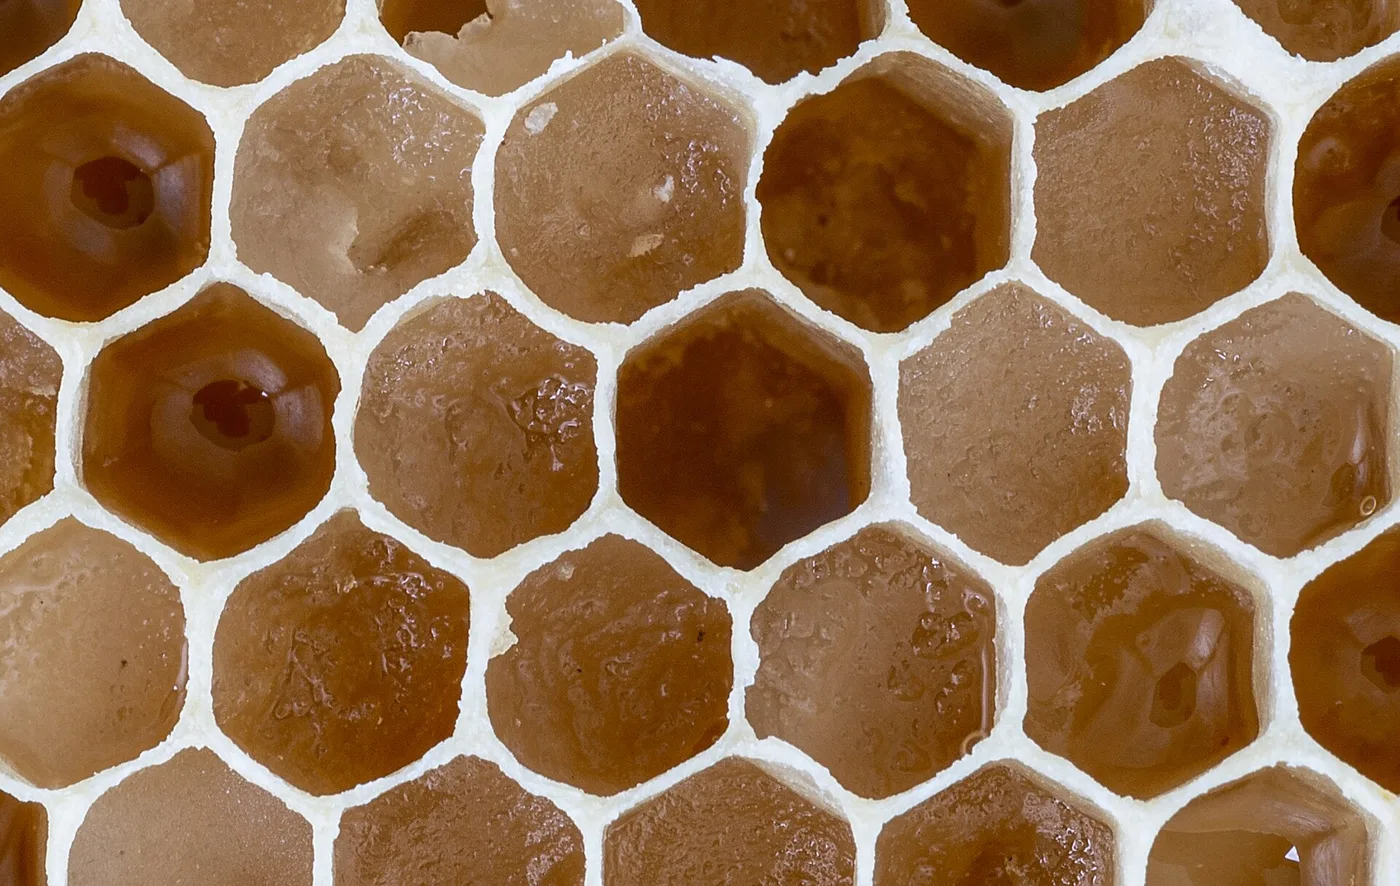
Bal tarafında da benzer bir tablo vardır: Can, Yıldız ve Şahin (2015), Türkiye’nin farklı yörelerinden toplanan balların fizikokimyasal özellikleri ile antioksidan kapasitelerini karşılaştırdı ve fenolik profil ile antioksidan kapasitenin yöreye göre belirgin biçimde değiştiğini gösterdi. Bu, hem balın kalite sınıflandırmasında hem de arıcının “hangi floral kaynak” kararında işe yarayan bir bilgidir. Bal çeşitlerinin özellikleri bal çeşitleri rehberinde toplandı.
Buna karşılık yalnızca şeker şurubuyla yapılan besleme, protein ve fenolik girişini sıfıra yaklaştırır. Şurup açlığı önler ama antioksidan savunmayı beslemez. Polen ikamesi kullanılıyorsa protein içeriği kadar ham madde kalitesi de sorgulanmalıdır; protein keki ve polen ikame yemleri yazısı bu dengeyi anlatır.
Kışlama: oksidatif hasar kışın birikir
Kış, arı için metabolik olarak “dinlenme” değildir: kovan sıcaklığını korumak için kaslar aylarca titrer, arı dışkıyı biriktirir, su ve taze polen bulamaz. Kojić ve arkadaşları (2019), kışlamanın başı (kasım) ile sonu (mart) arasındaki oksidatif durumu üç farklı bölgede (kentsel, endüstriyel, kırsal) inceledi. Bulgular:
- Lipit peroksidasyonu (MDA) üç bölgede de kışlama sonunda daha yüksekti; yani hasar kış boyunca birikiyor.
- Antioksidan enzimlerin (SOD, CAT, GST) aktivitesi kış sonunda arttı, ancak çoğu genin ifadesi azaldı. Aktivite ile ifade aynı yönü göstermedi; bu, tek bir ölçütle “savunma güçlü/zayıf” demenin yanıltıcı olduğunu gösterir.
- SOD aktivitesi ve mikrozomal GST izoformlarının ifadesi, bulunulan bölgenin çevresel koşullarından en çok etkilenen parametreler oldu.
Arıcılık açısından yorumu nettir: ilkbahara çıkan kadronun kalitesi, kışın “arıyı sıcak tutmak”la değil, kışa genç, yağ gövdesi dolu ve varroa yükü düşük bir kadroyla girmekle belirlenir. Kış hazırlığının takvimi kasımda kış hazırlığı ve kış salkımı yazılarında ayrıntılı.
Arıcı için yedi pratik ölçüt
- Polen çeşitliliği: Koloninin birden fazla bitki familyasından polen toplayabildiği bir arılık konumu seçin; tek tür ekim alanına bağımlılık antioksidan çeşitliliğini azaltır.
- Varroa yükünü sonbaharda düşürün: Kışa giren arının oksidatif yükünü belirleyen en büyük tek etken budur.
- Şurup tek başına yeterli değildir: Uzun süreli şurup beslemesinde protein/fenolik girişini ayrıca planlayın.
- İlaçlama takvimini öğrenin: Çevredeki ekim ve ilaçlama dönemlerinde kovanı gölgeye alın, su kaynağını temiz tutun; ölü arı sayısı düşük olsa bile koloni performansını izleyin.
- Genç ana arı: Ana arının yaşı koloninin yağ gövdesi dengesini ve kadro yenilenmesini etkiler; ana arı kalitesi değerlendirmesi ana arı kalite değerlendirme yazısında.
- Kovan içi iklimi abartmayın: Aşırı yalıtım ve havalandırmasızlık nemi yükseltir, koloniyi gereksiz metabolik yüke sokar.
- Tek ölçüte güvenmeyin: Koloni gücü, yavru deseni, varroa sayımı ve kış çıkışı birlikte okunmalıdır.
Bu mekanizmaların koloni düzeyindeki bağışıklık karşılığı arılarda sosyal bağışıklık yazısında; arı fizyolojisinin diğer başlıkları bilgi kütüphanesi altında toplandı.
Sıkça sorulan sorular
Oksidatif stres arıda hangi belirtilerle görünür?
Doğrudan görünen bir belirti yoktur; oksidatif stres hücre düzeyinde ölçülen bir durumdur. Sahada dolaylı işaretler sayılabilir: hızlı yaşlanan kadro, tarlacılığa erken geçiş, kış çıkışında zayıf performans ve yüksek kış kaybı.
Antioksidan vermek arıya fayda sağlar mı?
Doğrudan “antioksidan takviyesi” arıcılıkta kanıta dayalı bir uygulama değildir. Kanıtlanmış olan, antioksidan kapasitenin hammaddesinin polenden geldiğidir; yani çeşitli ve yeterli polen akımı sağlamak, hazır antioksidan ürün vermekten daha sağlam bir yaklaşımdır.
Kraliçe arı neden bu kadar uzun yaşıyor?
Ana arıda vitellogenin düzeyi yüksek, juvenile hormon ve insülin sinyali düşüktür; yağ gövdesindeki antioksidan kapasite de buna eşlik eder. Corona ve arkadaşlarının (2007) çalışması bu üç ekseni uzun ömürle ilişkilendirdi.
Kışın ölen arıların sebebi sadece soğuk mu?
Hayır. Kış arısı soğuğa iyi dayanır; asıl belirleyici kışa girişteki kadro kalitesi, varroa yükü ve stok durumudur. Kojić ve arkadaşları (2019) lipit peroksidasyonunun kış sonunda arttığını gösterdi; bu birikim zayıf kadroda kış kaybına dönüşebilir.
Balın antioksidan kapasitesi ölçülebilir mi?
Evet, laboratuvarda fenolik içerik ve radikal süpürme testleriyle ölçülür. Ancak değer tek başına balın “daha iyi” olduğunu göstermez; floral kaynak, tazelik ve işleme koşulları da sonucu etkiler.
Kaynakça
- Seehuus, S.-C., Norberg, K., Gimsa, U., Krekling, T., & Amdam, G. V. (2006). Reproductive protein protects functionally sterile honey bee workers from oxidative stress. Proceedings of the National Academy of Sciences, 103(4), 962-967. https://doi.org/10.1073/pnas.0502681103
- Corona, M., & Robinson, G. E. (2006). Genes of the antioxidant system of the honey bee: annotation and phylogeny. Insect Molecular Biology, 15(6), 687-701. https://doi.org/10.1111/j.1365-2583.2006.00695.x
- Corona, M., Velarde, R. A., Remolina, S., Moran-Lauter, A., Wang, Y., Hughes, K. A., & Robinson, G. E. (2007). Vitellogenin, juvenile hormone, insulin signaling, and queen honey bee longevity. Proceedings of the National Academy of Sciences, 104(17), 7128-7133. https://doi.org/10.1073/pnas.0701909104
- Amdam, G. V., & Omholt, S. W. (2003). The hive bee to forager transition in honeybee colonies: the double repressor hypothesis. Journal of Theoretical Biology, 223(4), 451-464. https://doi.org/10.1016/S0022-5193(03)00121-8
- Kojić, D. K., Purać, J. S., Nikolić, T. V., Orčić, S. M., Vujanović, D., Ilijević, K., Vukašinović, E. L., & Blagojević, D. P. (2019). Oxidative stress and the activity of antioxidative defense enzymes in overwintering honey bees. Entomologia Generalis, 39(1), 33-44. https://doi.org/10.1127/entomologia/2019/0743
- Rueppell, O., Yousefi, B., Collazo, J., & Smith, K. (2017). Early life stress affects mortality rate more than social behavior, gene expression or oxidative damage in honey bee workers. Experimental Gerontology, 90, 19-25. https://doi.org/10.1016/j.exger.2017.01.015
- Tahir, F., Goblirsch, M., Adamczyk, J., Karim, S., & Alburaki, M. (2023). Honey bee Apis mellifera L. responses to oxidative stress induced by pharmacological and pesticidal compounds. Frontiers in Bee Science, 1, 1275862. https://doi.org/10.3389/frbee.2023.1275862
- Ulusoy, E., & Kolaylı, S. (2013). Phenolic composition and antioxidant properties of Anzer bee pollen. Journal of Food Biochemistry, 38(1), 73-82. https://doi.org/10.1111/jfbc.12027
- Can, Z., Yıldız, O., Şahin, H., Turumtay, E. A., Silici, S., & Kolaylı, S. (2015). An investigation of Turkish honeys: Their physico-chemical properties, antioxidant capacities and phenolic profiles. Food Chemistry, 180, 133-141. https://doi.org/10.1016/j.foodchem.2015.02.024
- Jimenez, D. R., & Gilliam, M. (1989). Age-related changes in midgut ultrastructure and trypsin activity in the honey bee, Apis mellifera. Apidologie, 20(4), 287-303. https://doi.org/10.1051/apido:19890402
Bilgilendirme: Bu yazı bilimsel literatürü özetleyen genel bilgi amaçlı bir derlemedir; sahada teşhis ve tedavi kararları için yerel tarım müdürlüğü ve uzman görüşü esas alınmalıdır.